Методи визначення механізму таргетованої деградації білків
Методи визначення механізму таргетованої деградації білків
О. В. Васильченко, Т. Ю. Трохимчук, М. А. Архипова, Д. Б. Старосила, С. М. Григор’єва, О. М. Дерябін
ДУ «Інститут епідеміології та інфекційних хвороб ім. Л. В. Громашевського НАМН України», Київ, Україна
Резюме. Таргетована деградація білків (ТДБ) — сучасний підхід до створення нових лікарських засобів, який потребує не лише реєстрації зменшення кількості мішені, а й поетапного доведення механізму дії сполуки. Для розробки препарату за цією методологією фіксація зникнення мішені є необхідною, але недостатньою, оскільки сама собою не розрізняє протеасомну деградацію, пригнічення синтезу, втрату епітопу, токсичність або зміну розчинності білка. Тому аналіз деградерів має спиратися на ієрархію методів, що послідовно оцінюють рівень білка, селективність і кінетику відповіді, зв’язування сполуки з мішенню або E3-лігазою, формування тернарного комплексу, убіквітинування та залежність втрати білка від протеасомного кліренсу. У роботі узагальнено методи, які застосовують під час розробки деградерів, і розподілено їх за предметом вимірювання, типом експериментальної відповіді та механістичною інформацією, яку вони надають.
Мета дослідження. Визначити ієрархію експериментальних методів, які застосовують для встановлення механізмів дії деградерів білків, та показати, які етапи цього механізму можна перевірити за допомогою кожної групи методів.
Висновки. Для обґрунтованої розробки деградерів недостатньо показати лише зменшення рівня білка-мішені. Необхідне поєднання кількісних, біофізичних, клітинних, структурних і причинних методів, які разом підтверджують зв’язування сполуки, формування продуктивного комплексу з E3-лігазою, убіквітинування мішені та її протеасомну деградацію. Така поетапна система доказів зменшує ризик хибної інтерпретації результатів і підвищує раціональність оптимізації молекул.
Ключові слова: таргетована деградація білків, тернарний комплекс, люмінісценція, флуоресценція.
METHODS FOR DETERMINING THE MECHANISM OF TARGETED PROTEIN DEGRADATION
O. V. Vasylchenko, T. Yu. Trokhymchuk, M. A. Arkhypova, D. B. Starosyla, S. M. Hryhorieva, O. M. Deriabin
SI “The L. V. Hromashevsky Institute of Epidemiology and Infection Diseases of NAMS of Ukraine”, Kyiv, Ukraine
Summary. Targeted protein degradation (TPD) is a modern strategy for developing new therapeutic agents that requires not only detection of decreased target abundance but also stepwise validation of the compound’s mechanism of action. In this approach, the disappearance of the target protein is necessary but insufficient, because it does not by itself distinguish proteasomal degradation from inhibition of protein synthesis, loss of antibody epitope, toxicity, or altered protein solubility. Therefore, degrader analysis should rely on a hierarchy of methods that sequentially assess target protein abundance, selectivity and kinetics, compound binding to the target or E3 ligase, ternary complex formation, ubiquitination, and dependence of target loss on proteasomal clearance. This article summarizes methods used in degrader development and groups them by the measured parameter, type of experimental response, and mechanistic information provided by each method.
Objective: to define a hierarchy of methods used to study protein degraders and to show which stage of the mechanism of action is assessed by each group of methods.
Conclusions. Rational development of protein degraders cannot rely solely on the observed decrease in target protein abundance. Quantitative, biophysical, cellular, structural, and causal assays should be combined to confirm compound binding, formation of a productive E3-ligase complex, target ubiquitination, and proteasome-dependent degradation. This stepwise evidentiary framework reduces the risk of false interpretation and supports more rational optimization of molecules.
Keywords: targeted protein degradation, ternary complex, luminescence, fluorescence.
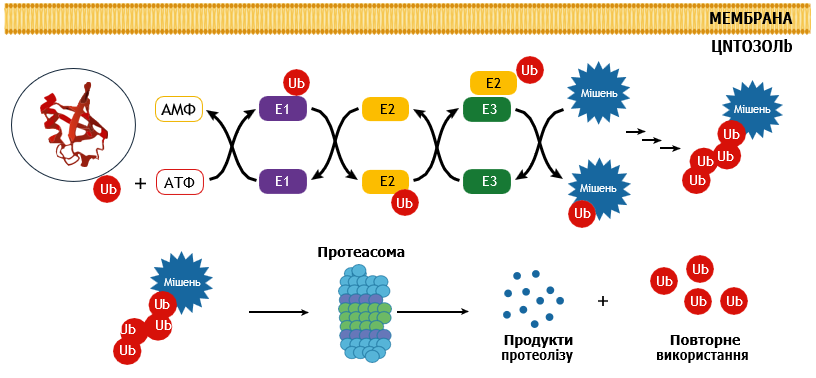
Клінічна поява деградерів білків засвідчила, що фармакологічно керована втрата мішені може бути терапевтично релевантною стратегією, а не лише інструментом хімічної біології [1]. Сучасна таргетована деградація білків (ТДБ) базується на залученні клітинних механізмів деградації білків, переважно убіквітин-протеасомної системи (рис. 1). В її основі лежить деградація білків за допомогою 26S протеасоми — комплексу протеолітичних ферментів, що розщеплюють білки на малі пептиди [2]. Для того щоб цільовий білок був деградований, він має бути позначений убіквітиновою міткою — кількома молекулами убіквітину (ubiquitin, Ub), поєднаними в один ланцюг. Убіквітин — висококонсервативний регуляторний білок, що складається із 76 амінокислот і має молекулярну масу приблизно 8,5 кДа [3]. Процес приєднання убіквітину до мішені називається убіквітинуванням. Це багатостадійний процес, який включає активацію убіквітину ферментом E1, передавання активованого убіквітину на убіквітин-кон’югувальний фермент E2 і подальше розпізнавання білка-мішені E3-убіквітинлігазою, яка каталізує перенесення убіквітину з E2 на субстрат [4]. Убіквітиновані білки спрямовуються до протеасоми для деградації, а убіквітин після процесингу субстрату може бути вивільнений і використаний повторно [5].
У ТДБ спостереження втрати мішені є нижнім рівнем доказовості, оскільки саме собою вимірювання кількості білка не має причинної специфічності. Білок може зникати через рекрутування E3-лігази та протеасомне розщеплення, але також через пригнічення транскрипції або трансляції, зміну локалізації, нерозчинність, маскування епітопу або загальний стрес клітини. Якщо ці сценарії не розмежовані, оптимізація хімічної серії може помилково фокусуватися на хибному механізмі, що ускладнює розробку або не дає змоги досягти бажаного результату [6].
Мета дослідження: визначити ієрархію експериментальних методів, які застосовують для встановлення механізмів дії деградерів білків, та показати, які етапи цього механізму можна перевірити за допомогою кожної групи методів.
Обговорення
Аналіз механізму дії деградера має безпосереднє значення для медичної хімії, оскільки допомагає відрізнити справжню продуктивну деградацію від непрямих або артефактних змін рівня білка. Ієрархію доказів у ТДБ умовно можна поділити на п’ять рівнів: кількісну оцінку рівня білка; зв’язування сполуки з білками (мішенню та лігазою); методи, що встановлюють зближення мішені з лігазою і формування тернарного комплексу; убіквітинування мішені; методи, що доводять деградацію в протеасомі [6, 15, 19].
1. Кількісна оцінка рівня білка
Методи цього блоку встановлюють факт втрати мішені, а залежно від застосованого підходу їх можна поділити на декілька підгруп.
1.1. Методи з використанням антитіл для визначення білка
Western blot [7]. Принцип роботи. Клітини обробляють активною сполукою, після чого через визначений проміжок часу лізують. Білки з лізату розділяють електрофорезом за молекулярною масою, переносять на мембрану та виявляють специфічним первинним і міченим вторинним антитілом. Денситометрію виконують у лінійному діапазоні сигналу з нормалізацією на загальний білок або валідований референсний білок. Метод вимірює відносну кількість мішені, її видимий молекулярний розмір, ізоформи або стабільні фрагменти.
Переваги. Доступний; одночасно дає інформацію про розмір білка.
Обмеження. Залежить від якості антитіл, має невисоку пропускну здатність.
Капілярний Western blot [8]. Принцип роботи. Це автоматизована варіація Western blot, у якій електрофоретичне розділення, іммобілізація та імунодетекція відбуваються всередині капіляра. Сигнал реєструють за хемілюмінесцентною або флуоресцентною відповіддю.
Переваги. Потребує менше зразка; краще стандартизується; придатний для більших серій.
Обмеження. Залежить від платформи та антитіл; може бути менш гнучким для нестандартних білків або великих фрагментів.
ELISA (enzyme-linked immunosorbent assay — імуноферментний аналіз) [9]. Принцип роботи. З лізату мішень захоплюють антитілом на твердій поверхні або в розчині, після чого детектують другим антитілом, пов’язаним із ферментним сигналом. Після додавання субстрату фермент утворює забарвлений, флуоресцентний або люмінесцентний продукт. Інтенсивність сигналу переводять у відносну або абсолютну кількість білка за калібрувальною кривою.
Переваги. Добре масштабується для багатолункових форматів; має ширший динамічний діапазон, ніж класичний Western blot; зручний для первинного відбору багатьох умов або сполук.
Обмеження. Може не відрізняти повнорозмірний білок від фрагментів; потребує високоякісної пари антитіл; чутливий до артефактів, зумовлених іншими компонентами лізату або маскуванням епітопу.
1.2. Репортерні системи через мічення мішені
Мічення за допомогою флуоресцентних білків [10]. Принцип роботи. Білок-мішень мітять флуоресцентним білком, після чого інтенсивність флуоресценції використовують як непрямий показник кількості мішені. У мікроскопічному форматі одночасно оцінюють локалізацію білка.
Переваги. Дозволяє спостерігати процес у живих клітинах; підходить для мікроскопії та автоматизованого відбору; може показувати зміну локалізації.
Обмеження. Тег може змінити стабільність, локалізацію чи доступність білка.
Мічення за допомогою NanoLuc (експресія мішені, з’єднаної з NanoLuc-люциферазою) [11]. Принцип роботи. Мішень мітять NanoLuc-люциферазою; люмінесцентний сигнал, що виникає після додавання субстрату цієї люциферази, є пропорційним кількості мішені.
Переваги. Має високу чутливість; добре підходить для високопродуктивного пошуку активних молекул; дає змогу зчитувати сигнал у реальному часі без лізису клітин.
Обмеження. Потребує модифікації клітин; тег може впливати на біологію мішені.
HiBiT/LgBiT (high-affinity BiT peptide/large BiT fragment — високоафінний пептид/великий фрагмент NanoLuc) [12]. Принцип роботи. Мішень мітять не повною NanoLuc-люциферазою, а коротким високоафінним HiBiT-пептидом. HiBiT комплементує великий фрагмент LgBiT, і разом вони утворюють активний комплекс NanoLuc, інтенсивність сигналу якого прямо пропорційна кількості мішені.
Переваги. Набагато менший розмір мітки, що зменшує вплив на мішень.
Обмеження. Для зчитування сигналу потрібно або лізувати клітини і додавати LgBiT у реакційній суміші, або забезпечити додаткову експресію LgBiT всередині клітини.
1.3. Мас-спектрометричні методи аналізу
LC-MS/MS DDA (liquid chromatography-tandem mass spectrometry, data-dependent acquisition — рідинна хроматографія з тандемною мас-спектрометрією, залежне від даних накопичення) [13]. Принцип роботи. Клітини лізують, а білки розщеплюють трипсином до пептидів, які розділяють рідинною хроматографією. У MS1 реєструють іони-попередники, після чого найінтенсивніші іони послідовно відбирають для іонної деструкції у MS2. Ідентифікацію білків виконують за спектрами фрагментних іонів. Метод вимірює відносну кількість тисяч білків, зміну рівня мішені, вибірковість деградації та зміни протеому.
Переваги. Не потребує антитіл чи модифікації клітин; забезпечує широкий огляд протеому.
Обмеження. Може мати стохастичні пропуски низькоінтенсивних пептидів; потребує високовартісного обладнання та спеціалізованого програмного забезпечення.
LC-MS/MS DIA/SWATH (data-independent acquisition/sequential window acquisition of all theoretical mass spectra — незалежне від даних накопичення/послідовне накопичення спектрів у масових вікнах) [14]. Принцип роботи. Метод подібний до LC-MS/MS DDA, але для MS2 вибирають не лише найінтенсивніші піки, а послідовні діапазони m/z, наприклад 400–425, 425–450 тощо. Усі іони в кожному вікні фрагментують, а алгоритми розділяють змішані MS2-спектри за спектральною бібліотекою або без неї. Це підвищує відтворюваність кількісного порівняння між зразками.
Переваги. Дозволяє за один аналіз оцінити вплив сполуки на тисячі білків і краще порівнювати часові або концентраційні серії.
Обмеження. Потребує складної обчислювальної обробки на потужних серверах.
2. Зв’язування сполуки з білками
Ця група методів надає докази зв’язування деградера з мішенню деградації та/або з відповідною лігазою.
SPR (surface plasmon resonance — поверхневий плазмонний резонанс) [15]. Принцип роботи. Мішень іммобілізують на сенсорній поверхні, а сполуку додають у розчині; зміна показника заломлення біля поверхні сенсора реєструє асоціацію та дисоціацію в реальному часі. Так можна виміряти константу дисоціації, швидкість асоціації та дисоціації, а також час утримання ліганда на білку.
Переваги. Дає кінетичні параметри.
Обмеження. Іммобілізація мішені може блокувати її зв’язування з лігандом; потрібні якісний очищений білок і сполука; слабкі або дуже швидкі взаємодії складно аналізувати.
ITC (isothermal titration calorimetry — ізотермічна титраційна калориметрія) [16]. Принцип роботи. Під час титрування комплексів білків вимірюють теплоту зв’язування і з неї обчислюють термодинамічні параметри взаємодії, константу зв’язування, стехіометрію, ентальпійний та ентропійний внески.
Переваги. Не потребує міток або поверхневої іммобілізації; прямо оцінює термодинаміку.
Обмеження. Потребує багато очищеного матеріалу; має низьку пропускну здатність; слабкі або малотеплові взаємодії можуть бути важкими для інтерпретації.
FP (fluorescence polarization — флуоресцентна поляризація) [17]. Принцип роботи. Ліганд з флуоресцентною міткою після зв’язування з мішенню обертається повільніше і дає вищий сигнал флуоресцентної поляризації. При додаванні активної сполуки мічений ліганд може витіснятися в розчин, його швидкість обертання зростає, а сигнал флуоресцентної поляризації зменшується, що дає змогу виміряти спорідненість або конкурентну здатність сполук до зв’язування з мішенню.
Переваги. Швидкий, масштабований і відносно дешевий формат; придатний для первинного відбору активних сполук.
Обмеження. Потребує міченого ліганду; флуоресцентні або агрегуючі сполуки можуть давати артефакти; непридатний для деяких великих або складних систем.
CETSA/TSA (cellular thermal shift assay/thermal shift assay — клітинний аналіз термічного зсуву/аналіз температурного зсуву) [18]. Принцип роботи. Зв’язування ліганда може змінювати термостабільність білка: після нагрівання до певної температури незв’язана частина мішені може агрегувати і випадати в осад, тоді як зв’язана фракція може залишатися більш або менш розчинною. Зміна кількості розчинного білка вказує на зв’язування сполуки з мішенню. В клітинному виконанні для якісного результату використовують методи аналізу кількості білка в лізаті, тоді як для in vitro з чистим білком достатньо виміряти загальну кількість білка.
Переваги. Швидкий, масштабований і відносно дешевий формат; придатний для первинного відбору активних сполук.
Обмеження. Не кожне зв’язування змінює термостабільність; нагрівання може спричиняти артефакти; результат є непрямим показником взаємодії.
NanoBRET TE (NanoLuc bioluminescence resonance energy transfer target engagement — визначення клітинного зв’язування мішені за допомогою NanoLuc-біолюмінесцентного резонансного перенесення енергії) [19]. Принцип роботи. Мішень мітять NanoLuc, енергію люмінесценції якої може приймати спеціальний флуоресцентний ліганд, що зв’язується з мішенню і випромінює на іншій довжині хвилі. Без досліджуваної сполуки перенесення енергії відбувається, якщо сполука витісняє ліганд, сигнал зникає. Так можна кількісно оцінити зв’язування активної сполуки через конкуренцію з лігандом.
Переваги. Працює в живих клітинах; дає кількісні концентраційні криві; корисний для оцінки проникнення та клітинної доступності сполуки. Часто використовується для первинного та високопродуктивного пошуку активних сполук.
Обмеження. Потребує мічення білка і відповідного ліганду; мічення NanoLuc може впливати на зв’язування мішені зі сполуками.
3. Методи, що встановлюють зближення мішені та лігази і формування тернарного комплексу
Застосування методів цієї групи дає змогу зафіксувати формування комплексу між мішенню та лігазою, що є ключовим моментом ТДБ, тому вони найчастіше застосовуються для доведення механізмів дії деградерів.
3.1. Методи, що використовують оптичні системи передачі сигналу
BLI (biolayer interferometry — біошарова інтерферометрія) [20]. Принцип роботи. На кінчику оптичного сенсора розміщують біосумісний шар, на який іммобілізують молекулу мішені або лігази. Сенсор занурюють у розчин із другою молекулою та сполукою, яку тестують. Якщо лігаза зв’язується з мішенню, товщина біошару на сенсорі збільшується; це змінює інтерференцію відбитого світла, і прилад реєструє сигнал.
Переваги. Зручний для первинного пошуку активних сполук.
Обмеження. Чутливий до поверхневих артефактів; менш інформативний для дуже слабких або швидких взаємодій; потребує контролю неспецифічного зв’язування.
TR-FRET (time-resolved fluorescence resonance energy transfer — часороздільне флуоресцентне резонансне перенесення енергії) [21]. Принцип роботи. Мішень і лігазу мітять тегами, що зв’язуються з донором і акцептором сигналу; сигнал виникає коли активна сполука зближує їх на відстань, придатну для перенесення енергії. Систему опромінюють специфічною довжиною хвилі для активації донора, зазвичай лантаноїдного, оскільки він зберігає світіння тривалий час після опромінення. Після цього акцептор сигналу поглинає світло на довжині хвилі донора і починає флуоресціювати на новій довжині хвилі; цей сигнал реєструють як результат зближення. Поява сигналу фіксує утворення тернарного комплексу.
Переваги. Добре підходить для первинного пошуку активних сполук.
Обмеження. Потрібна модифікація клітинних ліній. Сигнал залежить від орієнтації міток і концентрацій білків; можливі оптичні артефакти. Якщо активна сполука має занадто високу концентрацію, вона може сформувати окремі комплекси з білком-мішенню та лігазою, через що сигнал зв’язування не виникне; тому активні молекули можна пропустити при дослідженні лише в одній концентрації. Передача енергії працює на відносно невеликій відстані, тому для дуже великих тернарних комплексів можлива втрата сигналу.
AlphaScreen/AlphaLISA (amplified luminescent proximity homogeneous assay screen/linked immunosorbent assay — ампліфікований люмінесцентний гомогенний аналіз близькості) [20]. Принцип роботи. Метод подібний до TR-FRET, мішень та лігазу зв’язують із донорними та акцепторними гранулами. Передавання сигналу відбувається не через випромінювання, а через реактивний кисень; акцепторні гранули створюють люмінесцентний сигнал після взаємодії з реактивним киснем.
Переваги. Передача реактивного кисню відбувається на відстань 100–200 нанометрів, тому підходить для тернарних комплексів великого розміру.
Обмеження. Близькість не дорівнює продуктивному зв’язуванню, тому просторове зближення без формування функціонального тернарного комплексу може давати хибнопозитивні результати.
NanoBRET (NanoLuc bioluminescence resonance energy transfer — біолюмінесцентне резонансне перенесення енергії на основі NanoLuc) [19]. Принцип роботи. Один партнер мітять NanoLuc, а другий — спеціальною міткою-акцептором, зазвичай HaloTag, який зв’язується зі специфічним лігандом і флуоресціює після збудження енергією NanoLuc. Зближення білків у живій клітині ініціює перенесення енергії.
Переваги. Працює у живих клітинах; дає кількісні криві.
Обмеження. Потребує мічення білків; сигнал залежить від експресії, локалізації та орієнтації міток.
NanoBiT (NanoLuc Binary Technology — бінарна технологія комплементації NanoLuc) [22]. Принцип роботи. Це клітинна система комплементації NanoLuc. Мішень та лігазу мітять окремими частинами NanoLuc. Якщо після додавання активної сполуки відбувається просторове зближення цих фрагментів, вони утворюють активний комплекс NanoLuc, а додавання його субстрату створює світловий сигнал.
Переваги. Дуже чутливий клітинний сигнал; просте кількісне зчитування; придатний для часових кривих та високопродуктивного пошуку активних сполук.
Обмеження. Формування NanoLuc може стабілізувати комплекс, який без міток був би нестабільним, що може призводити до хибнопозитивних результатів.
3.2. Методи, що використовують антитіла для виділення тернарного комплексу
co-IP (co-immunoprecipitation — коімунопреципітація) [23]. Принцип роботи. Тернарний комплекс містить білок-мішень та лігазу, тому після лізування клітин один білковий партнер захоплюють антитілом або афінною міткою, після чого другий партнер визначають Western blot або мас-спектрометрією. Таким чином, у формуванні сигналу беруть участь обидва компоненти тернарного комплексу.
Переваги. Прямо захоплює білковий комплекс.
Обмеження. Умови лізису можуть руйнувати слабкі взаємодії або створювати штучні комплекси; потрібні негативні контролі.
3.3. Методи, що використовують фізичні підходи до дослідження структури
X-ray crystallography (рентгенівська кристалографія) [24]. Принцип роботи. Кристал білка або комплексу мішень-деградер-E3-лігаза опромінюють рентгенівським випромінюванням, а дифракційну картину використовують для побудови атомної моделі. Така структура показує нові контакти між білками та положення ліганда.
Переваги. Висока атомна роздільна здатність; пряме бачення контактів; корисність для раціональної оптимізації.
Обмеження. Потребує кристалів; кристалічна упаковка може спотворювати конформацію; гнучкі комплекси часто важко кристалізувати.
Cryo-EM (cryogenic electron microscopy — кріогенна електронна мікроскопія) [25]. Принцип роботи. Комплекси швидко заморожують у тонкому шарі льоду та візуалізують електронним мікроскопом; багато знімків усереднюють для реконструкції структури. Це дає змогу побачити, як сполука організує мішень і лігазний комплекс у просторі, навіть якщо окремі частини залишаються рухливими або представлені кількома конформаціями.
Переваги. Не потребує кристалів; придатна для великих і гнучких систем; може виявляти кілька станів комплексу.
Обмеження. Малі комплекси складно реконструювати; інтерпретація гнучких ділянок обмежена.
NMR (nuclear magnetic resonance — ядерний магнітний резонанс) [25]. Принцип роботи. Магнітні властивості атомних ядер дають інформацію про хімічне середовище окремих залишків, тому за зміщеннями сигналів можна визначати ділянки контакту з лігандом або партнером. Це корисно при аналізі слабких взаємодій, рухливих лінкерів і конформаційних змін, які можуть визначати здатність утворювати продуктивний тернарний комплекс.
Переваги. Працює в розчині; чутливий до динаміки; може виявляти слабкі або транзієнтні взаємодії.
Обмеження. Повні комплекси часто неможливо досліджувати, тому аналізують їхні фрагменти; метод потребує ізотопного мічення та складної спектральної інтерпретації.
4. Убіквітинування мішені
Методи цієї групи використовують для встановлення факту убіквітинування мішені після обробки дегрейденом, що разом з іншими методами допомагає у встановлені механізмів дії деградерів.
Target IP-Ub (target immunoprecipitation-ubiquitin detection — імунопреципітація мішені з детекцією убіквітину) [26]. Принцип роботи. У клітинній системі створюють умови інгібування протеасоми, щоб убіквітиновані форми не були швидко зруйновані, після чого виконують імунопреципітацію мішені з клітинного лізату. Далі убіквітиновані форми визначають антитілами до убіквітину або мас-спектрометрією.
Переваги. Ближчий до причинного механізму, ніж проста кількісна оцінка рівня білка.
Обмеження. Високий фон ускладнює кількісний аналіз; убіквітиновий сигнал часто нестабільний і короткочасний.
In vitro ubiquitination assay (аналіз убіквітинування in vitro) [27]. Принцип роботи. Очищені E1-, E2-, E3-лігазу, субстрат, убіквітин, аденозинтрифосфат та активну сполуку змішують поза клітиною, після чого визначають появу убіквітинованого субстрату.
Переваги. Дає контроль над компонентами; дозволяє тестувати мутації, E2/E3-комбінації.
Обмеження. Не містить усіх необхідних клітинних компонентів, тому результат може не повністю відтворюватися в клітині.
5. Методи, що доводять деградацію у протеасомі
Ці методи дозволяють встановити, що відсутність мішені викликана саме протеасомною деградацією, а не іншими факторами.
Proteasome rescue (відновлення рівня білка після інгібування протеасоми) [28]. Принцип роботи. Клітини попередньо або паралельно обробляють інгібітором протеасоми, після чого додають активну речовину і визначають рівень мішені. Якщо інгібітор послаблює або скасовує втрату мішені, це підтримує модель протеасомної деградації мішені.
Переваги. Простий причинний експеримент; добре поєднується з раннім убіквітинуванням.
Обмеження. Інгібітори протеасоми спричиняють глобальний стрес, токсичність і накопичення багатьох білків; довге інгібування може маскувати первинний механізм.
CRISPR/RNAi (clustered regularly interspaced short palindromic repeats/RNA interference — кластеризовані регулярно розташовані короткі паліндромні повтори/РНК-інтерференція) [29]. Принцип роботи. Застосовують для встановлення, які клітинні компоненти необхідні для дії деградера. Гени E3-лігази, адаптерів, ферментів убіквітинового циклу, протеасомних або лізосомних компонентів вимикають або пригнічують, а потім оцінюють, чи змінюється деградація мішені або чутливість клітин. Якщо втрата певного компонента скасовує деградацію, це перетворює кореляційне спостереження зникнення білка на причинний висновок про потрібний шлях.
Переваги. Може виявляти механізми резистентності, потрібну E3-лігазу та клітинні фактори чутливості; придатний для неупередженого пошуку.
Обмеження. Показник виживання може відображати вторинний ефект; необхідні кілька guide RNA, перевірка на рівні білка і rescue-контроль. Використання складних механізмів редагування геному потребує ретельної валідації та контролю позамільових (off-target) ефектів.
Висновки
Застосування ієрархічного підходу до аналізу механізму дії деградерів білків дозволяє трансформувати первинне спостереження втрати мішені у валідований фармакологічний механізм. На основі проведеного аналізу можна зробити такі підсумки:
Подолання хибних механізмів: кількісна оцінка рівня білка (Western blot, ELISA, репортерні системи) є обов’язковим первинним скринінгом, але без подальшого аналізу вона не доводить протеасомний кліренс.
Ключовий етап ТДБ: методи аналізу тернарного комплексу (зокрема NanoBRET, TR-FRET та кріо-ЕМ) є вирішальними для медичної хімії, оскільки саме термодинамічна й просторова продуктивність комплексу «мішень-деградер-E3» визначає ефективність убіквітинування.
Причинно-наслідкова валідація: підтвердження реального шляху деградації вимагає обов’язкового комбінування тестів на убіквітинування (Target IP-Ub) та відновлення рівня білка при інгібуванні протеасоми (Proteasome rescue), а також генетичного вимкнення E3-лігази (CRISPR/RNAi).
Стратегічне значення: використання панелі ортогональних методів на ранніх етапах розробки мінімізує ризики оптимізації неспецифічних сполук і забезпечує раціональний дизайн високовибіркових деградерів.
Література
1. Mullard A. First PROTAC gains FDA approval, bolstering targeted protein degradation and induced proximity ambitions. Nature Reviews Drug Discovery. 2026;25:411. https://doi.org/10.1038/d41573-026-00078-6
2. Collins G. A., Goldberg A. L. The Logic of the 26S Proteasome. Cell. 2017;169(5):792–806. https://doi.org/10.1016/j.cell.2017.04.023
3. Ciechanover A., Orian A., Schwartz A. L. Ubiquitin-mediated proteolysis: biological regulation via destruction. BioEssays. 2000;22(5):442–451. https://doi.org/10.1002/(SICI)1521-1878(200005)22:5<442::AID-BIES6>3.0.CO;2-Q
4. Chaugule V. K., Walden H. Specificity and disease in the ubiquitin system. Biochemical Society Transactions. 2016;44(1):212–227. https://doi.org/10.1042/BST20150209
5. Finley D. Recognition and Processing of Ubiquitin-Protein Conjugates by the Proteasome. Annual Review of Biochemistry. 2009;78:477–513. https://doi.org/10.1146/annurev.biochem.78.081507.101607
6. Crowe C., Ciulli A. Methods to Study the Molecular Mechanism and Drive the Design of Protein Degraders. Chemical Reviews. 2026;126:5755–5791. https://doi.org/10.1021/acs.chemrev.5c00800
7. Towbin H., Staehelin T., Gordon J. Electrophoretic transfer of proteins from polyacrylamide gels to nitrocellulose sheets. Proceedings of the National Academy of Sciences of the USA. 1979;76(9):4350–4354. https://doi.org/10.1073/pnas.76.9.4350
8. Anderson G. J., Cipolla C. M., Kennedy R. T. Western blotting using capillary electrophoresis. Analytical Chemistry. 2011;83(4):1350–1355. https://doi.org/10.1021/ac102671n
9. Engvall E., Perlmann P. Enzyme-linked immunosorbent assay (ELISA): quantitative assay of immunoglobulin G. Immunochemistry. 1971;8(9):871–874. https://doi.org/10.1016/0019-2791(71)90454-X
10. Riching K. M. et al. Quantitative Live-Cell Kinetic Degradation and Mechanistic Profiling of PROTAC Mode of Action. ACS Chemical Biology. 2018;13(9):2758–2770. https://doi.org/10.1021/acschembio.8b00692
11. Hall M. P. et al. Engineered Luciferase Reporter from a Deep Sea Shrimp Utilizing a Novel Imidazopyrazinone Substrate. ACS Chemical Biology. 2012;7(11):1848–1857. https://doi.org/10.1021/cb3002478
12. Schwinn M. K. et al. CRISPR-Mediated Tagging of Endogenous Proteins with a Luminescent Peptide. ACS Chemical Biology. 2018;13(2):467–474. https://doi.org/10.1021/acschembio.7b00549
13. Aebersold R., Mann M. Mass-spectrometric exploration of proteome structure and function. Nature. 2016;537(7620):347–355. https://doi.org/10.1038/nature19949
14. Gillet L. C. et al. Targeted data extraction of the MS/MS spectra generated by data-independent acquisition. Molecular & Cellular Proteomics. 2012;11(6):O111.016717. https://doi.org/10.1074/mcp.O111.016717
15. Ward J. A. et al. Biophysical and Computational Approaches to Study Ternary Complexes. ChemBioChem. 2023;24(14):e202300163. https://doi.org/10.1002/cbic.202300163
16. Wiseman T. et al. Rapid measurement of binding constants and heats of binding using a new titration calorimeter. Analytical Biochemistry. 1989;179(1):131–137. https://doi.org/10.1016/0003-2697(89)90213-3
17. Jameson D. M., Ross J. A. Fluorescence polarization/anisotropy in diagnostics and imaging. Chemical Reviews. 2010;110(5):2685–2708. https://doi.org/10.1021/cr900267p
18. Martinez Molina D. et al. Monitoring drug target engagement in cells and tissues using the cellular thermal shift assay. Science. 2013;341(6141):84–87. https://doi.org/10.1126/science.1233606
19. Kou Z. et al. Tracking the PROTAC degradation pathway in living cells highlights the importance of ternary complex measurement for PROTAC optimization. Cell Chemical Biology. 2023;30(7):753–765.e8. https://doi.org/10.1016/j.chembiol.2023.06.002
20. Przytulski K. et al. Comparative analysis of biophysical methods for monitoring protein proximity induction in the development of small molecule degraders. Biochimica et Biophysica Acta – General Subjects. 2023;1867(9):130398. https://doi.org/10.1016/j.bbagen.2023.130398
21. Lin W., Chen T. General Stepwise Approach to Optimize a TR-FRET Assay for Characterizing the BRD/PROTAC/CRBN Ternary Complex. ACS Pharmacology & Translational Science. 2021;4(3):941–952. https://doi.org/10.1021/acsptsci.1c00032
22. Dixon A. S. et al. NanoLuc Complementation Reporter Optimized for Accurate Measurement of Protein Interactions in Cells. ACS Chemical Biology. 2016;11(2):400–408. https://doi.org/10.1021/acschembio.5b00753
23. Lin J. S., Lai E. M. Protein-Protein Interactions: Co-Immunoprecipitation. Methods in Molecular Biology. 2017;1615:211–219. https://doi.org/10.1007/978-1-4939-7033-9_17
24. Gadd M. S. et al. Structural basis of PROTAC cooperative recognition for selective protein degradation. Nature Chemical Biology. 2017;13(5):514–521. https://doi.org/10.1038/nchembio.2329
25. Roy M. J., Ciulli A. Breaking free from the crystal lattice: Structural biology in solution to study protein degraders. Current Opinion in Structural Biology. 2023;79:102534. https://doi.org/10.1016/j.sbi.2023.102534
26. Kim W. et al. Systematic and quantitative assessment of the ubiquitin-modified proteome. Molecular Cell. 2011;44(2):325–340. https://doi.org/10.1016/j.molcel.2011.08.025
27. Nowak R. P. et al. Plasticity in binding confers selectivity in ligand-induced protein degradation. Nature Chemical Biology. 2018;14(7):706–714. https://doi.org/10.1038/s41589-018-0055-y
28. Rock K. L. et al. Inhibitors of the proteasome block the degradation of most cell proteins. Cell. 1994;78(5):761–771. https://doi.org/10.1016/S0092-8674(94)90462-6
29. Mayor-Ruiz C. et al. Plasticity of the Cullin-RING Ligase Repertoire Shapes Sensitivity to Ligand-Induced Protein Degradation. Molecular Cell. 2019;75(4):849–858.e8. https://doi.org/10.1016/j.molcel.2019.07.013
Відомості про авторів
Васильченко О. В. — к. х. н., н. с. лабораторії експериментальної хіміотерапії вірусних інфекцій ДУ «Інститут епідеміології та інфекційних хвороб ім. Л. В. Громашевського НАМН України». ORCID: 0000-0002-8631-6203.
Трохимчук Т. Ю. — к. б. н., с. н. с. лабораторії експериментальної хіміотерапії вірусних інфекцій ДУ «Інститут епідеміології та інфекційних хвороб ім. Л. В. Громашевського НАМН України». ORCID: 0009-0008-8208-0855.
Архипова М. А. — к. б. н., с. н. с. лабораторії експериментальної хіміотерапії вірусних інфекцій ДУ «Інститут епідеміології та інфекційних хвороб ім. Л. В. Громашевського НАМН України». ORCID: 0000-0001-5860-2870.
Старосила Д. Б. — к. б. н., завідувачка лабораторії експериментальної хіміотерапії вірусних інфекцій ДУ «Інститут епідеміології та інфекційних хвороб ім. Л. В. Громашевського НАМН України», завідувачка лабораторії ТОВ «НВК «Екофарм». ORCID: 0000-0003-0210-2361.
Григор’єва С. М. — к. мед. н., с. н. с. лабораторії експериментальної хіміотерапії вірусних інфекцій ДУ «Інститут епідеміології та інфекційних хвороб ім. Л. В. Громашевського НАМН України». ORCID: 0009-0003-7560-6429.
Дерябін О. М. — н. с. лабораторії експериментальної хіміотерапії вірусних інфекцій ДУ «Інститут епідеміології та інфекційних хвороб ім. Л. В. Громашевського НАМН України». ORCID: 0000-0001-5702-0190.
Information about the authors
Vasylchenko O. V. — PhD in Chemistry, Researcher, Laboratory of Experimental Chemotherapy of Viral Infections, SI “L. V. Hromashevsky Institute of Epidemiology and Infectious Diseases of the NAMS of Ukraine”. ORCID: 0000-0002-8631-6203.
Trokhymchuk T. Yu. — PhD in Biology, Senior Researcher, Laboratory of Experimental Chemotherapy of Viral Infections, SI “L. V. Hromashevsky Institute of Epidemiology and Infectious Diseases of the NAMS of Ukraine”. ORCID: 0009-0008-8208-0855.
Arkhypova M. A. — PhD in Biology, Senior Researcher, Laboratory of Experimental Chemotherapy of Viral Infections, SI “L. V. Hromashevsky Institute of Epidemiology and Infectious Diseases of the NAMS of Ukraine”. ORCID: 0000-0001-5860-2870.
Starosyla D. B. — PhD in Biology, Head of the Laboratory of Experimental Chemotherapy of Viral Infections SI “L. V. Hromashevsky Institute of Epidemiology and Infectious Diseases of the NAMS of Ukraine”, Head of Laboratory, LLC “SPC “Ekopharm”. ORCID: 0000-0003-0210-2361.
Hryhorieva S. M. — PhD in Medicine, Senior Researcher, Laboratory of Experimental Chemotherapy of Viral Infections, SI “L. V. Hromashevsky Institute of Epidemiology and Infectious Diseases of the NAMS of Ukraine”. ORCID: 0009-0003-7560-6429.
Deriabin O. M. — Researcher, Laboratory of Experimental Chemotherapy of Viral Infections, SI “L. V. Hromashevsky Institute of Epidemiology and Infectious Diseases of the NAMS of Ukraine”. ORCID: 0000-0001-5702-0190.
Дата надходження статті: 28.05.2026 р. Дата рецензування: 08.06.2026 р. Дата публікації: 01.10.2026 р.
Конфлікт інтересів. Автори заявляють про відсутність конфлікту інтересів. Conflict of interest. The authors declares no conflict of interest.